Donnerstag, 7. August 2014

Lektion 4


Methoden der Evolutionsforschung


Neben den geologischen und anatomischen Belegen für Evolution spielen heute vor allem biochemische und genetische Methoden eine wichtige Rolle bei der Aufdeckung von Verwandschaftsverhältnissen. Im folgenden sollen einige dieser Methoden kurz erläutert werden. Alle Verfahren beruhen auf der folgenden Erkenntnis: Je näher die Verwandtschaft, desto ähnlicher das Erbgut d.h. desto ähnlicher ist die DNA Sequenz bzw. die Sequenz der durch sie kodierten Proteine. 


Aminosäuresequenzanalyse


Hier untersucht man die Aminosäuresequenz eines Proteins, das bei sehr vielen Lebewesen vorkommt. Cytochrom C ist beispielsweise ein Protein, dass sich für eine solche Verwandschaftsanalyse eignet. Als Teil der Atmungskette  kommt bei allen Lebewesen vor, die Zellatmung betreiben. Das Protein und damit seine Sequenz sind hochkonserviert. Hierdurch wird seine Struktur und damit seine Funktionalität gewährleistet. Vergleicht man jedoch die Aminosäuresäure-sequenz des Cytochrom C aus verschiedenen Organismen miteinander, beobachtet man (abgesehen von individuellen Mutationen) dennoch einzelne Unterschiede zwischen den verschiedenen Spezies, die jedoch eine geringe Auswirkung auf die Struktur und damit auf die Funktionalität des Proteins haben. Anhand der Anzahl dieser Unterschiede kann man Schlüsse auf den Verwandschaftsgrad verschiedener Organismen ziehen und einen molekularen Stammbaum aufstellen:

Die folgende Abbildung zeigt einen Ausschnitt der Aminosäuresequenz des Cytochroms C aus verschiedenen Organismen: 


Unterschiede der Cytochrom C - Aminosäuresequenz aus verschiedenen Organismen (Quelle: http://www.scheffel.og.bw.schule.de)

 
Zählt man nun alle Unterschiede in den verschiedenen Cytochrom C - Aminosäuresequenzen bezogen auf den Menschen, kommt man zu folgendem Ergebnis: 


Unterschiede in der Aminosäuresequenz des Cytochrom C verschiedener Organsimen (Quelle: http://www.scheffel.og.bw.schule.de)


Hieraus wird deutlich, dass sich die Aminosäuresequenzen von Rhesusaffe und Mensch lediglich in einer Position unterscheiden, wohingegen zwischen Mensch und Huhn deutlich mehr Unterschiede bestehen. Hieraus kann man schliessen, dass sich im Stammbaum des Lebens Vorfahren von Mensch und Huhn bereits sehr früh getrennt haben und der Rhesusaffe näher verwandt mit dem Menschen ist als z.B. Pferd oder Huhn. Anhand solcher Daten lässt sich ein molekularer Stammbaum nach dem folgenden Schema aufstellen:


Molekularer Stammbaum des Cytochrom C   (Quelle: http://www.scheffel.og.bw.schule.de)


Serum-Präzipitin-Test


Der Serum-Präzipitin-Test ist ein serologischer Verwandtschaftsnachweis, der auf der Präzipitation von  Eiweissen (Proteinen) mit Antikörpern im Blutserum beruht. Hierzu wird einem Tier (z.B einem Pferd) Blut entnommen und daraus das Serum isoliert. Dieses Serum wird z.B. einem Kaninchen injiziert, das daraufhin Antikörper gegen die im Serum befindlichen Proteine produziert.  Anschliessend wird das Serum mit den produzierten Antikörpern aus dem Kaninchen isoliert und für die Testreihe verwendet. Als Positivkontrolle wird dieses Kaninchenserum mit dem Pferdeserum vermischt. Aufgrund der hohen Affinität der (pferdespezifischen) Antikörper mit dem Pferdeproteinen kommt es zur Verklumpung. Der Grad der Verklumpung wird als Maximum (100%) gesetzt.
Auch die Vermischung des Kaninchenserums mit den Blutserum führt zur Verklumpfung, jedoch fällt diese bei geringerem Verwandschaftsgrad schwächer aus, da die Antikörper eine geringere Affinität zu den im Serum enthaltenen Eiweissen haben. 
Der Test basiert also auf einer spezifischen Antigen-Antikörper-Reaktion, die zum Feststellen der antigenen Übereinstimmung zweier Organismen im Hinblick auf ihre Proteine dient.  Je ähnlicher sich die Aminosäuresequenzen der verwendeten Serumproteine sind, umso größer ist die genetische Übereinstimmung, woraus eine größere Verwandtschaft und eine stärkere Verklumpung (Präzipitation, Fällung) durch das Serum folgt. 
Neben der Untersuchung von stammesgeschichtlichen Verwandtschaften (Phylogenie) wurde dieser Test auch zum Nachweis von Beimischungen nicht-deklarierter Tierarten in Fleisch und Wurst angewandt.


Beispiel für einen Serum Präzipitin Test  (Quelle Wikipedia)


Durchführung:
  • Es wird Blutserum vom Menschen entnommen und einem Kaninchen injiziert.
  • Nach einiger Zeit bildet das Kaninchen Antikörper gegen die Eiweiße des Menschen (genauer: gegen antigene Proteine und Kohlenhydrate).
  • Nun wird Blut vom Kaninchen entnommen und daraus Testserum hergestellt.
  • Das Testserum wird zu Blutproben von Mensch, Schimpanse und Orang-Utan gegeben.
  • Es erfolgt eine Verklumpung (Ausfällung/Präzipitation) des Blutes im Testserum je nachdem, wie stark die Antikörper zu den Antigenen passen.

Ergebnis


  • Mensch: 100 %
  • Schimpanse: 83 %
  • Gorilla: 64 %
  • Orang-Utan: 42 %
  • Pavian: 29 %
  • Rind: 10 %
  • Schaf: 18 %
  • Hirsch: 7 %
  • Pferd: 3 %
  • Beuteltier: 0 %
  • Vogel: 0%


DNA-Basensequenzvergleich (Quelle: http://www.scheffel.og.bw.schule.de)


Ähnlich wie beim Aminosäurensequenzvergleich kann man auch die DNA-Sequenzen eines häufig vorkommenden Gens in unterschiedlichen Organsismen vergleichen. Je ähnlicher die Abfolge der Basen, desto enger verwandt sind die Organismen. Jede abweichende Base ist die Folge einer Mutation.  Je mehr Mutationen, desto früher muss die getrennte Entwicklungslinie begonnen haben. Jedoch muss man hierbei folgendes beachten:
  • Vergleicht man nur einen kurzen Gen-Abschnitt, dann kann die Aussage über Verwandtschaft nur sehr ungenau sein!
  • Da die Mutationshäufigkeit in manchen Genen sehr unterschiedlich ist, müssen viele Gene untersucht werden! 
  •  


DNA-Hybridisierung


Die DNA- Doppelhelix „schmilzt“ bei ca. 80° - 90° C. Hierbei werden H-Brücken gespalten und die DNA-Einzelstränge trennen sich. Messbar ist dies z.B. durch Veränderung der „Zähflüssigkeit“ (= Viskosität). Durch den Vergleich der Schmelzpunkte von gebildeten Hybrid-DNAs lassen sich Aussagen bezüglich des Verwandschaftsgrades ziehen. Hybrid-DNA, d.h. DNA-Doppelstränge aus artverschiedener DNA schmilzt früher, da nicht alle Basen sich paar können. Aufgrund weniger H-Brücken ist eine "leichtere" Trennung der Doppelhelix in Einzelstränge durch Erhitzen möglich. Je näher der „Hybrid-Schmelzpunkt“ dem „Schmelzpunkt“ der artreinen DNA, desto ähnlicher die DNA, desto näher verwandt die untersuchten Organismen.


Verwandschaftsanalyse mittels DNA-Hybridiserung (Quelle: http://www.scheffel.og.bw.schule.de)


Embryologie


Die Zeichnung von Ernst Haeckel von 1866 zeigt drei Embryonalstadien verschiedener Wirbeltiere. Haeckel leitete daraus die These ab, dass sich in der Embryonalentwicklung die Entstehung der Art wiederholt. Die These ist inzwischen widerlegt, allerdings können aus der Embryonalentwicklung Informationen gewonnen werden über die Homologie und Analogie von Organen und Gliedmassen (siehe Kapitel 3).


Zeichnungen dreier Embryonalstadien verschiedener Wirbeltiere von Ernst Haeckel 1866 als Konzeptbeleg der biogenetischen Grundregel
(Quelle: Wikipedia)


Die biogenetische Grundregel ist die 1866 aus diesen Beobachtungen abgeleitete, von Ernst Haeckel aufgestellte These in der Biologie, die einen bestimmten Zusammenhang zwischen der Entwicklung des einzelnen Lebewesens (Ontogenese) und seiner Stammesentwicklung (Phylogenese) behauptet. Sie besagt: „Die Ontogenese rekapituliert die Phylogenese.“

Eine strikte Umsetzung der postulierten Rekapitulation ist aufgrund vielfacher Anpassungen von Larven und anderen Entwicklungsstadien an die jeweilige Umwelt sowie an die Anforderungen der Zell- und Organdifferenzierung jedoch nicht gegeben. Daher spricht man – wenn überhaupt – auch nicht mehr vom biogenetischen Grundgesetz, sondern von der biogenetischen Grundregel, im nicht-deutschen Sprachraum nur von der Rekapitulationstheorie. Sie gilt nicht für den Genotypus, das heißt die genetische Bestimmtheit eines Lebewesens, sondern – falls man sie überhaupt akzeptiert – nur für den Phänotypus, das heißt für das äußere Erscheinungsbild. 
Die von Karl Ernst von Baer 1828 formulierte Baer-Regel ist ein Vorläufer der von Ernst Haeckel 1866 aufgestellten biogenetischen Grundregel. Von Baer erkannte bei Wirbeltieren, dass deren Embryonen verschiedener Arten immer schwerer zu unterscheiden sind je jünger sie angetroffen werden. Baer nannte dies das Gesetz der Embryonenähnlichkeit. Baer glaubte also in dieser Beobachtung eine Gesetzmäßigkeit zu erkennen. Genauso wie die weitergehende biogenetische Grundregel Ernst Haeckels, die aus der Ähnlichkeit den Schluss der Verwandtschaft und der (umstrittenen) Entwicklungsrekapitulation zieht, musste auch dieses „Gesetz“ später relativiert werden. Beide werden nur noch als Regel bezeichnet.
(Quelle: Wikipedia)


Lektion 3


Anatomische Ähnlichkeiten

Homologie - Analogie - Konvergenz


Homologie


Als Homologie bezeichnet man in der biologischen Systematik und der vergleichenden Anatomie die grundsätzliche Übereinstimmung von Organen, Organsystemen, Körperstrukturen, physiologischen Prozessen oder Verhaltensweisen zweier Taxa aufgrund ihres gemeinsamen evolutionären Ursprungs. Homologe Merkmale gehen auf Merkmale des gemeinsamen Vorfahren zurück, sie sind also gleichwertig bezüglich ihrer stammesgeschichtlichen Herkunft. Die ursprünglichen Merkmale können sich danach in verschiedene Richtungen entwickelt haben und in unterschiedlichen Funktionen gebraucht werden (Quelle: Wikipedia) .

Homologie der Handknochen bei verschiedenen Säugetieren:
I Mensch     II Hund     III Schwein     IV Kuh     V Tapir     VI Pferd
( „Gegenbaur 1870 hand homology“ von Original Artwork presumably by Carl Gegenbaur (1826—1903). Digital photo by Alexei Kouprianov)

Der Biologe Adolf Remane stellte dazu drei Homologiekriterien auf, anhand derer auf die jeweilige Verwandschaft geschlossen werden kann. Trifft bereits eines dieser Kriterien zu, liegt Homologie vor: 

1. Kriterium der Lage

Organe sind dann homolog, wenn sie die selbe Lage einnehmen; z.B. der Aufbau des Herzens ist bei fast allen Säugetieren identisch. Ein weiteres Beispiel sind die Vordergliedmassen bei Pferd und Mensch.


Kriterium der Lage (Quelle: www.bio-kompakt.de)


2. Kriterium der spezifischen Qualität

Organe sind auch dann homolog, wenn sie sich in vielen komplexe Einzelmerkmalen gleichen. Beispiel: Homologie Zahn/Schuppe bei Wirbeltieren bzw. Haifischen


Kriterium der spezifischen Qualität (Quelle: www.bio-kompakt.de)

Obwohl die Schuppe des Haifisches an ganz anderen Stellen als die Zähne von Wirbeltieren vorkommen, lässt sich trotzdem auf Homologie schließen. Zwar ist auch hier eine unterschiedliche Funktion Tatsache, aber der Aufbau der Schuppe und des Zahns ähneln sich zu sehr, als dass man von Zufall geschweige denn von Analogie ausgehen könnte. Die Geninformation ist fast identisch.


 3. Kriterium der Kontinuität

Organe sind homolog, wenn sich deren Entwicklung durch die Verknüpfung von Zwischenformen (Progressionsreihe) erklären lässt. Beispiele hierfür sind die Entwicklung der Gehörknöchel oder der Blutkreisläufe.

Entwicklug der Gehörknöchel:

In unserem Ohr befinden sich drei Knöchel, die essenziell für unsere Fähigkeit zum Hören sind. Auf der unteren Abbildung ist die Progressionsreihe (stark vereinfacht) dargestellt. Man erkennt, dass die Knöchel allesamt von Kieferknochen abstammen und diese sich im Laufe der Zeit zurückgebildet haben müssen.
1. Bei den Fischen gehören die drei Knochen noch fest zum Kiefergelenk dazu.
2. Bei den Reptilien hat sich hingegen der Hyomandibulare schon so stark zurückgebildet (Columella), dass er für das Hören eingesetzt wird und keine Bedeutung mehr für den Kieferapparat hat.

3. Bei Säugetieren sind alle drei Knochen extrem stark zurückgebildet. Sie übernehmen keine Funktion mehr für den Kiefer und haben auch ihre Lage weiter verschoben. Sie liegen jetzt fernab des Kiefers und zueinander senkrecht.

Entwicklung der Gehörknöchel; Kriterium der Kontinuität (Quelle:  www.bio-kompakt.de)


Analogie


Analoge Organe sind Organe die zwar die selbe Funktion haben, ihren Ursprung jedoch nicht in einem gemeinsamen Vorfahren, sondern durch ähnlichen Umweltbedingungen, die zu einer ähnlichen Entwicklung führten. Analogien lassen demnach auch keine Rückschlüsse auf etwaige Verwandschaftsbeziehungen zu. Es wird angenommen, dass ähnliche ökologische Nischen mit ähnlichem Selektionsdruck zu der Ausbildung von analogen Organen bei unterschiedlichen Arten führen.
Auf den ersten Blick ist nicht zu erkennen, ob zwei Strukturen unterschiedlicher Arten homolog oder analog sind. Analogie lässt sich aber im Detail feststellen, denn wenn die Erbinformationen nicht gleich sind, müssen normalerweise auch wesentliche Unterschiede vorhanden sein.
Die Ausbildung analoger Strukturen unter ähnlichen Umweltbedingungen (= gleich gerichteter Selektionsdruck) bezeichnet man als Konvergenz.


Trotz ihrer Ähnlichkeiten haben sich die Flügel von Flugsaurier (1), Fledertieren (2) und Vögeln (3) unabhängig voneinander entwickelt und stellen somit ein analoges Organ dar (Quelle: www.biologie-schule.de).


Flugfähigkeit hat sich bei drei Wirbeltiergruppen - 1 Pterosauriern, 2 Fledertieren und 3 Vögeln konvergent entwickelt. Ihre Vorderextremitäten sind homologe Gebilde und in ihrer Funktion als Flügel zugleich eine Analogie. Die Flügel werden bei Pterosauriern vom 4. Finger getragen, bei den Fledertieren vom 2. bis 5. und bei den Vögeln wesentlich vom 2. Finger. (Quelle: Wikipedia, „Homology“ von John Romanes (1892): Darwin and after Darwin - Picture from John Romanes' )

Ein weiteres Beispiel für eine Analogie sind die Flossen bei Fischen und Walen (Vorfahren der Wale waren landlebende Säugetiere) 


Rudimente und Atavismen


Bei vielen Organismen treten Merkmale auf, die nur unvollständig ausgeprägt sind oder keine Funktion mehr besitzen. Dieses Phänomen, welches in der Biologie unter dem Begriff Rudiment bekannt ist, kann Organe ebenso wie Verhalten betreffen und ist ein wesentlicher Beleg für die Evolutionstheorie. Durch die im Laufe der Evolution veränderten Lebensbedingungen wurden manche Organe (z.B. beim Menschen die Körperbehaarung) überflüssig und entwickelten sich zurück, da sie keinen Evolutionsvorteil mehr boten. Manche Organe erwiesen sich sogar als Nachteil, wie z.B. die Hinterläufe der Vorfahren des Wals. Die frühen Vorfahren des Wals waren landlebende, auf vier Beinen laufende Säugetiere. Im Laufe der Evolution haben bestimmte Faktoren dazu geführt, dass der Vorfahre des Wals seinen Lebensraum wieder ins Wasser verlagerte. Die Hinterläufe wurden damit überflüssig und entwickelten sich mit der Zeit zurück und sind heute als Rudiment im Skelett des Wals sichtbar:

Weitere Beispiele für Rudimente (Mann) sind u.a.:

  • Eck- und Weisheitszähne
  • Haare auf Rücken/Brust
  • Brustwarzen
  • Steißbein (aus ihm entsprang früher ein Schwanz)
  • Ohrmuskeln (manche können heute noch ihre Ohren bewegen)
  • Wurmfortsatz (Anhängsel vom Blinddarm, entzündet sich leicht)


Atavismen


Unter einem Atavismus versteht man nun das zufällige Auftreten eines anatomischen Merkmals, das im Laufe der Stammesgeschichte schon einmal vorhanden war, dann aber irgendwann im Laufe der Evolution phänotypisch verloren ging.
Atavismen deuten darauf hin, dass die Gene von früheren Merkmalen weiter im Genotyp vorhanden sind, jedoch durch bestimmte Gründe blockiert sein müssen. Das Wiederauftreten dieser Merkmale kann durch verschiedenste Faktoren ausgelößt werden. Mutationen, die bestimmte Gene einschalten/ausschalten oder die Genregulation beeinflussen können, kann ebenso Grund sein, wie auch Bastardisierung zweier verwandten Arten, wodurch blockierte Gene wieder aktiviert werden könnten.
Als Atavismus bezeichnet man heute übrigens auch die Fälle, bei denen durch Mutationen Merkmale von Vorfahren auftreten. Also beispielsweise bei Menschen den massiven Haarwuchs schon bei Neugeborenen (fallen normal nach wenigen Tagen aus) oder eine schwanzartige Verlängerung des Steißbeines.
Atavismus: Schwanzfortsatz beim Menschen (Quelle: www.allmystery.de)


Mittwoch, 6. August 2014

Lektion 2


Argumente für die Evolutionstheorie


Paläontologie


Die Paläontologie  ist die Wissenschaft von den Lebewesen vergangener Erdzeitalter (z.B. Kreidezeit). Gegenstand paläontologischer Forschung sind Fossilien (lat. fossilis „ausgegraben“), das heißt in Sedimentgesteinen vorkommende Organismenreste und sonstige Hinweise auf vorzeitliche Lebewesen (Quelle: Wikipedia).
Die Paläontologie ist unabdingbar, wenn es darum geht Argumente für die Evolutionstheorie zu finden und zu geben. Evolution ist ein langer Prozess, der mit der Entwicklung von Arten einhergeht. Paläontologische Funde lassen Vergleiche zwischen verstorbenen und noch lebenden Individuen zu und auf diese Weise können Verbindungen geknüpft und neue Hypothesen aufgestellt werden. Denn wie ließe sich etwa die Stammesgeschichte des Menschen nachweisen, wenn nie zahlreiche Fossile gefunden worden wären, die die Entwicklung von affenartigen Wesen bishin zur Gattung Homo aufzeigen würden (Quelle: www.biologie-heute.de).


Fossilien


Fossilien (lat. fossilis = ausgegraben) sind erhaltene Spuren von Pflanzen und Tieren vergangener Erdzeitalter. Dabei können Fossilien als 
  • Körperfossil (das Lebewesen selbst) oder als 
  • Spurenfossil (Spuren des Lebewesens, etwa Abdrücke) 
auftreten. Evolutionär verdeutlichen Fossilien den Artenreichtum und das Auftreten und Verschwinden von Individuen der vergangenen Erdgeschichte. Außerdem helfen sie bei der Erstellung von phylogenetischen Systematiken, wo es u.a. darum geht, welche Organismen sich woraus entwickelt haben.


Gesteinsstratigraphie


Das Ziel der Stratigraphie ist es, Gesteinskörper anhand der darin enthaltenen organischen und anorganischen Merkmale zeitlich relativ zu ordnen und auch räumlich weit entfernte Gesteinseinheiten miteinander zeitlich in Beziehung zu setzen (Korrelation).  Bis auf ein paar Ausnahmen (z.B. tektonische Verschiebungen) gilt dabei immer die Regel, dass untere Schichten älter sind als die oberen Schichten. So lassen sich relative Aussagen nach dem Schema "Fossil 1 ist älter als Fossil 2" treffen.


Quelle: www.terra-triassica.de


Biostratigraphie


Die Biostratigraphie beschäftigt sich mit der Gliederung und der relativen chronologischen Bestimmung von Gesteinseinheiten mit Hilfe von sogenannten Leitfossilien, also Fossilien, die für ein bestimmtes Erdzeitalter typisch sind.
Aus dem Fund solcher Leitfossilien lassen sich relative Aussagen zum Alter von umliegenden Gesteinsschichten machen.  Findet man zwei Leitfossilien an verschiedenen Orten sind die Schichten ungefähr gleich alt.
Damit eine Eingrenzung überhaupt möglich ist, muss ein Leitfossil die folgenden Bedingungen erfüllen:

  1. Zeitlich begrenzte Existenz (ansonsten werden die zu bestimmenden Zeitabschnitte zu groß)
  2. Weite geographische Verbreitung (damit über weite Entfernungen verglichen werden kann)
  3. Häufiges Auftreten in der entsprechenden Periode (denn findet man kein Leitfossil, ist diese Methode hinfällig) 
  4. Leichte Kenntlichkeit, d.h. Das Leitfossil weist typische Strukturen auf, die leicht erkannt werden können. Verwechslungen können größtenteils ausgeschlossen werden 

Beispiele für Leitfossilien:

Quelle: Wikipedia


Alterbestimmung mit Hilfe der Radiocarbonmethode


Mit Hilfe der Radiocarbonmethode lässt sich das Alter organischer Stoffe ermitteln. Lebewesen nehmen das radioaktive Kohlenstoffisotop 14C über die Nahrung auf. Stirbt das Lebewesen nimmt es kein 14C mehr auf, es wird dann nur noch abgebaut. Die Halbwertszeit von 14C  beträgt 5730 Jahre. Anhand der Menge des noch vorhandenden Kohlenstoffisotop 14C kann nun ziemlich genau (aber niemals exakt!) das Alter bestimmt werden. Der Nachteil dieser Methode ist die Begrenzung des Zeitlichen Anwendungsbereich, denn bei Funden die älter als 50.000 Jahre sind, ist 14C nur noch so gering vorhanden, das keine zuverlässlichen Messung mehr möglich ist.
Es gibt noch eine Reihe weiterer Messmethoden die anhand von zerfallenen Isotopen das Alter bestimmen könnnen. Jedoch wählt man dann Isotope mit einer deutlich größeren Halbwertszeit (z.B. Kalium-Argon-Datierung; Halbwertszeit 1,25 Milliarden Jahre)

Entstehung von 14C

14C wird ständig durch Kernreaktionen in der oberen Schicht der Erdatmosphäre neu gebildet. Wenn die kosmische Strahlung auf Atome der Atmosphäre trifft, werden durch Spallation Neutronen freigesetzt. Wenn das in der Atmosphäre mit Abstand häufigste Isotop, das Stickstoff-Isotop 14N, von einem solchen Neutron getroffen wird, so kann die Kernreaktion 14N(n,p)14C erfolgen, in der dieses Neutron eingefangen und dafür ein Proton abgespalten wird. Dadurch entsteht aus dem 14N-Kern ein 14C-Kern:


Zerfall von 14C

Während 12C und 13C stabil sind, zerfällt 14C mit einer Halbwertszeit von 5730 ± 40 Jahren (sog. „Cambridge-Halbwertszeit“) durch β−-Zerfall zu 14N, einem Elektron und einem Antineutrino:
ß-Zerfall (Quelle. Wikipedia „Beta-minus Decay“ von Inductiveload (modified))


Eine frische Kohlenstoff-Probe enthält nur etwa 1 Teil pro Billion (ppt) 14C-Atome. Auf 1012 Atome des Isotops 12C kommt also ein 14C-Atom. So enthält beispielsweise eine Tonne Kohlenstoff lediglich 1 µg 14C.
Die Nachweisgrenze von 14C liegt bei 1 Teil pro Billiarde (ppq), entsprechend einer Konzentration von etwa einem Tausendstel der Menge an 14C in einer frischen Probe.  Durch den radioaktiven Zerfall nimmt die Menge von 14C mit der Zeit ab. Nach 10 Halbwertszeiten, das sind ca. 57.300 Jahre, liegt der Anteil unterhalb der Nachweisgrenze. Die Radiokarbonmethode ist daher nur für jüngere Proben anwendbar. Für die Altersbestimmung erdgeschichtlicher Fossilien z. B. in Bernstein, Braunkohle, Steinkohle oder Diamanten, ist sie unbrauchbar (hier kann z. B. die Kalium-Argon-Datierung verwendet werden).
Quelle: Wikipedia


Brückentiere


Unter einem Brückentier (häufig auch Mosaikform) versteht man in der Biologie ein Tier, das Merkmale zweier unterschiedlicher Tiergruppen (z.B. Säugetiere, Fische, Amphibien, Vögel) in sich vereinigt. Für die Evolutionstheorie ist die Existenz von Mosaikformen ein wichtes Faktum, weil sie die Verwandschaft zweier Tiergruppen zueinander belegt und so davon auszugehen ist, dass Arten sich nicht nebeneinander, sondern auseinander entwickelt haben.
Man unterscheidet zwischen fossilen, also bereits ausgestorbenen Brückenformen (z.B. dem Archaeopteryx) und rezenten, heute noch lebenden Mosaikformen (z.B. das Schnabeltier). Rezente Brückentiere sind in der Regel auch lebende Fossilien.  (Quelle:  www.biologie-heute.de)

Beispiele für Brückentiere:

Fossile Brückentiere: Der Archaeopteryx


Der Archaeopteryx gilt aufgrund seiner Merkmale zweier Tierklassen als Brückentier zwischen Reptilien und Vögeln. Merkmale der zeitlich älteren Form der Reptilien sind unter anderem die Zähne, eine lange Schwanzwirbelsäule und ein unverschmolzener Mittelhandknochen. Zu den typischen Vogelmerkmalen gehört das Federkleid, die nach hinten gerichtete Zehe (Greiffuß), sowie die verwachsenen Schlüsselbeine (Gabelbein). 

Archaeopteriyx (Quelle:www.turbosquid.com)


Quelle: Fossil der Archaeopteryx (Quelle: www.theguardian.com)


Rezente Brückentiere: Das Schnabeltier


Das Schnabeltier scheint mit seinem Aussehen eines der bizarrsten Tiere des Tierreichs zu sein. Mit den Merkmalen eines Reptils (legt Eier, besitzt eine Kloake und Giftdrüsen) sowie eines Säugers (säugt seine Jungen über die Milchdrüsen, besitzt ein Fell) ausgestattet, wurde neuerdings durch modernste Gentechnik sogar noch die Verwandschaft zu der Gruppe der Vögel (u.a. zeigt es im Ausbrüten der Eier ein vogelähnliches Verhalten) hergestellt.


Schnabeltier (Quelle: www.ndr.de)


 NDR Beitrag zum Schnabeltier


Rezente Brückentiere: 

Der Quastenflosser, ein lebendes Fossil

 
Der Quastenflosser (Quelle:  www.ethz.ch)
Die Quastenflosser (Coelacanthiformes, „Hohlstachler“) sind eine Gruppe der Knochenfische in der Klasse der Fleischflosser. Ihre nächsten Verwandten sind die Lungenfische und die Landwirbeltiere (Tetrapoda). Die Quastenflosser gelten als das bekannteste Beispiel eines lebenden Fossils.
Ein gemeinsames Merkmal der Quastenflosser und Lungenfische ist das teilweise verknöcherte und mit Muskulatur versehene Skelett der Brust- und Bauchflossen.  Ähnlich gebaut sind aber auch die zweite Rücken- und die Afterflosse, die dem Fisch ein präzises örtliches Manövrieren ermöglichen.
Der Bau der Brust- und Bauchflossen ähnelt dem Bau der Gliedmaßen der Landwirbeltiere. Vermutlich haben frühe Quastenflosser-Arten ihre muskulösen Flossen zur Fortbewegung am Meeresboden, möglicherweise auch an Land benutzt. Ein mit Fett gefülltes blasenartiges Organ am Darm, das als Rudiment einer auch als Lunge nutzbaren Schwimmblase interpretiert wird, gilt als Indiz für die Fähigkeit der „Ur-Latimeria“, Luft zu atmen. Bei den rezenten Lungenfischen ist ein solches Organ noch vorhanden und funktionsfähig.
Quastenflosser werden oft als die „Urahnen“ der Landwirbeltiere (Amphibien etc.) dargestellt. Diese ungenaue Darstellung bezieht sich nicht auf die rezenten Quastenflosser, sondern auf die letzten gemeinsamen Vorfahren der Quastenflosser und der Landwirbeltiere. Hierdurch wird klar, dass Genomvergleiche der heute gefangenen Quastenflosser keine Aussage über die evolutionäre Verwandtschaft der „Ur-Quastenflosser“ zu den rezenten Landwirbeltieren zulassen. Die genetische Anpassung der den ursprünglichen Quastenflossern morphologisch sehr ähnlichen rezenten Tiere an den Lebensraum Kontinentalschelf hatte ebenso lange Zeit wie die Entwicklung der heute lebenden Landwirbeltiere. Die Wahrscheinlichkeit, dass das Genom der heutigen Quastenflosser dem der ältesten paläozoischen Formen gleicht, ist daher sehr gering, da eine ähnliche äußere Erscheinung keine Rückschlüsse auf die genetische Übereinstimmung zulässt. Tatsächlich ergaben genetische Vergleiche, dass die Lungenfische eine deutlich größere genetische Übereinstimmung mit den „Höheren Wirbeltieren“ aufweisen als die Quastenflosser. (Quelle: Wikipedia)

Ein versteinerter Vorfahre des heute lebenden Quastenflossers (Quelle: www.planet-schule.de)


Interessante Links zum Quastenflosser:

Planet Wissen - Der Quastenflosser

Die Zeit - Der Quastenflosser 

Spiegel Online - Der Quastenflosser 


Lektion 1


Hauptströmungen der Evolutionsgeschichte


Theorien zum Ursprung der Lebens finden sich bereits in den Schöpfungsmythen der verschiedensten Kulturen wieder.
Die wichtigsten Ideen, die zum Teil Wegbereiter der heutigen Theorien darstellen, sollen im folgenden kurz beleuchtet werden:


Antike


Im 6. Jahrhundert vor Christus ging Thales von Milet davon aus, dass das Wasser der Ursprung aller Dinge sei und versuchte damit eine nicht-mytologische Erklärung über die Entstehung des Lebens zu geben. Heute wissen wir, dass dieser Ansatz gar nicht so falsch war, denn ohne Wasser wäre kein Leben möglich.

  
Aristoteles (384–322 v. Chr.),
Aristoteles (Quelle: www.faz.net)
einer der bedeutendsten, griechischen Philosophen, sah alle Arten als ewig und unveränderlich an.


Lukrez 
(im 1. Jahrhundert v. Chr.)
hingegen beschreibt in De rerum natura  das Prinzip der ständigen Veränderung der Natur, das Aussterben, sowie die Natürlichen Auslese und die Notwendigkeit der Anpassung an die Umwelt als Voraussetzung für das Fortbestehen der Arten.  Diese Theorien wurde später von Darwin ausführlich beschrieben und bilden bis heute die Grundlage der moderen Ervolutionsbiologie.


Weltreligionen, wie das antike Christentum, ebenso wie das Judentum und der Islam, beinhalteten die aristotelische Lehre von der Konstanz der Arten, stellte aber zudem das Dogma auf, dass die Arten nicht auf natürliche Weise entstanden sind, sondern in einem Schöpfungsakt durch Gott.  
Auffassungen, die den Ursprung des Universums, des Lebens und letztendlich den Ursprung des Menschen auf den unmittelbaren Eingriff eines Schöpfergottes zurück führen, werden als Kreationismus zusammengefasst. Er entstand im 19. Jahrhundert als Widerstand gegen das Postulat eines hohen Erdalters und die darwinsche Evolutionstheorie. Heute richtet sich der Widerstand gegen die moderne Naturwissenschaft und den Atheismus.
Seine größte Bedeutung hat der Kreationismus in den christlich-fundamentalistischen und evangelikalen Richtungen in den USA. Dort hat er unter Wählern der konservativen Republikaner viele Anhänger, die sogenannte religiöse Rechte. Sie sprechen sich dafür aus, den Kreationismus zum Inhalt des Biologieunterrichts an Schulen zu machen. Da die US-amerikanische Verfassung jedoch ein Verbot religiöser Inhalte im Schulunterricht enthält und auch keinen gesonderten Religionsunterricht vorsieht, behaupten sie, der Kreationismus lasse sich als wissenschaftliche Theorie vertreten und könne folglich ohne Konflikt mit der Verfassung unterrichtet werden. Gerichte haben jedoch in letzter Instanz stets gegen diese Ansicht geurteilt. In seinen verschiedenen Formen changiert der Kreationismus zwischen Religionslehre und Pseudowissenschaft.
(Quelle: Wikipedia)

Auch wenn der Kreationismus in Deutschland kaum in der Öffentlichkeit präsent ist und seine Ideen belächelt werden: In einem Teil der evangelikalen Bewegung und in den meisten Freikirchen in Deutschland gehört der Kreationismus inzwischen zur Weltdeutung. Hier hält man es für selbstverständlich, dass die Bibel Recht und die Naturwissenschaft Unrecht hat.
Die wichtigste kreationistische Organisation im deutschen Sprachraum ist die 1979 von Theodor Ellinger und Horst W. Beck gegründete Studiengemeinschaft "Wort und Wissen" mit Sitz in Baiersbronn. Im freikirchlichen Raum hat sie sich als Autorität für die Ablehnung der Evolutionstheorie etabliert. Ein Kreis von mehreren tausend Personen unterstützen "Wort und Wissen", und sie ist vermutlich die personell und wissenschaftlich am besten ausgestattete kreationistische Organisation in Europa (Quelle:  www.planet-wissen.de).
In der Schweiz setzt sich der Verein «Pro Genesis» für die Verbreitung des Kreationismus ein (Quelle: www.nzz.ch).


Michelangelo: Die Erschaffung des Menschen, Sixtinische Kapelle Rom


Weiterführende, interessante Links:

Spiegel 2005: Kreationismus in den USA 

Biologie-Schule - Kreationismus

Planet Schule - Evolution und Kreationismus


Jean-Baptiste de Lamarck  

* 1. August 1744, † 28. Dezember 1829

Jean-Baptiste de Lamarck
Der Botaniker und Zoologe Jean-Baptiste Lamarck entwickelte Anfang des 19. Jahrhunderts, also noch lange vor Charles Darwin, eine eigene Evolutionstheorie. Die Theorie, die heute unter dem Begriff des "Lamarckismus" gebräuchlich ist, geht von der Grundannahme aus, dass Tiere ihre Eigenschaften, die sie im Laufe ihres Lebens erworben haben, an ihre Nachkommen weitervererben können. Lamarck begründete seine Auffassung mit den Umweltbedingungen, die in den Tieren quasi ein inneres Bedürfnis zur Anpassung auslösen.   

 Das häufigste Beispiel um die Theorie von Lamarck anschaulich zu machen, ist die Entwicklung des Halses der Giraffe. Der Lebensraum der Giraffe in den afrikanischen Steppen ist trocken und das Angebot nach pflanzlicher Nahrung begrenzt. Über Generationen hinweg musste sich die Giraffe nach Nahrung in höhergelegenden Bereichen der Bäume strecken, wodurch sich die Länge des Halses verlängerte. Von Generation zu Generation vererbten die Giraffen  - dieser Theorie nach- so ihre neu erworbene Halslänge weiter.
Das Schema dazu sähe so aus:
Bedürfnis der Lebewesen sich anzupassen -> Gebrauch von Organen führt zur stärkeren Ausbildung -> erworbene Merkmale werden weitervererbt.
Aus der heutigen Sicht ist der Lamarckismus widerlegt, weil sich demnach das Erbgut verändern müsste. Dies ist aber nicht der Fall, da die Gene sich durch den Gebrauch bzw. Nichtgebrauch von Organen nicht verändern. 
(Quelle: www.biologie-schule.de)


Charles Robert Darwin

* 12. Februar 1809, † 19. April 1882

Charles Darwin
Der Naturforscher Charles Darwin änderte mit seinem Werk "On the Origin of Species" (über die Entstehung der Arten) das Weltbild des Menschen und die bis dahin kaum hinterfragte Schöpfungs-geschichte völlig. Und das obwohl Darwin selbst studierter Theologe war und sich zunächst mit der Veröffentlichung seiner Theorie schwertat, weil er um die Folgen wusste. Aus den Beobachtungen seiner Schiffsreise über Teneriffa, die Kapverden, Kapstadt, Sidney, Neuseeland und die Galapagos Inseln formulierte er seine Theorie und prägte den Begriff des Prinzips "Survival of the fittest", also dem Überleben derer, die am besten an die Umweltbedingungen angepasst sind, bei dem die Stärksten im "Struggle for life" (Wettbewerb um Ressourcen) ihre Gene an die nächste Generation weitergeben.
 

Darwins Theorie besteht aus mehreren Annahmen:
  • Reproduktion: Individuen einer Population erzeugen immer mehr Nachkommen, als zu ihrer Arterhaltung eigentlich notwendig wären.
  • Variation: Die einzelnen Individuen in einer Population sind nie gleich. Sie unterscheiden sich in mehreren Merkmalen.
  • Selektion: Diejenigen Individuen die zufällig für die vorhandenen Umweltbedingungen besser angepasst sind als andere, haben einen Selektionsvorteil und überleben häufiger. Dadurch können sie ihre Gene (also auch ihre Merkmale) häufiger in die nächste Generation miteinbringen, als Individuen, die nicht so gut angepasst sind.
  • Vererbung: Variationen in den Merkmalen sind zu einem gewissen Teil vererbbar.

Zusammenfassend lässt sich also sagen, dass es durch Selektion langfristig zu einer natürlichen Auslese der Individuen einer Art kommt, die durch Zufall besser angepasst sind als ihre Artgenossen. Dadurch ändern sich die Merkmale einer Art über viele Generationen hinweg.

Darwin erkannte zwar das zufällige Auftreten neuer Merkmale innerhalb der jeweiligen Arten, konnte aber nicht begründen, woher diese Veränderung kommt. Erst die Genetik im 20. Jahrhunderts konnte diese zufällige Veränderung der Merkmale durch Rekombination und Mutation erklären und Darwins Theorie wissenschaftlich bestätigen. Heutzutage dient Darwins Theorie als Grundlage für die Synthetische Theorie der Evolution.  

(Quelle: www.biologie-schule.de)


Carl von Linné

* 23. Mai 1707, † 10. Januar 1778

Carl von Linné
Wenn man etwas über die Ordnung der Tiere und Pflanzen erfährt, dann folgt man den Spuren des schwedischen Forschers Carl von Linné. Der Sohn eines Pastors erfand die Einteilung der Lebewesen Mitte des 18. Jahrhunderts - und noch heute hat sie Bestand.

Im Jahr 1735 veröffentlichte Linné sein Hauptwerk "Systema naturae", das ihn schnell berühmt machen sollte. Mit seiner Abhandlung stellte er eine bis dahin nicht gekannte Systematik der Biologie vor. Er unterteilte die Natur in die drei Reiche Steine, Pflanzen und Tiere. Zum ersten Mal stellte er außerdem einen Weg vor, der die Bestimmung sämtlicher Pflanzen nach Zahl und Anordnung der Staubgefäße und Stempel ermöglichte.  
Außerdem führte der Forscher eine neue Namensgebung ein, die so genannte binäre Nomenklatur. Jedes Tier und jede Pflanze erhielten einen zweiteiligen lateinischen Namen, mit dem er auch den jeweiligen Artbegriff festlegte. So bekam das Hundsveilchen zum Beispiel den wissenschaftlichen Namen Viola canina. Der erste Name steht für die Gattung, der zweite für die Art (z.B. Homo sapiens, der Mensch). Latein war damals die Sprache der Gelehrten und sozusagen die überall verständliche Wissenschaftssprache. Durch eine einheitliche Namensgebung konnten sich weltweit Forscher verständigen. Sie untersuchten die Pflanzen ihrer Heimat und konnten ihre Ergebnisse mit denen der Forscher anderer Länder und Kontinente problemlos vergleichen.

Linné untersuchte, wie sich Pflanzen vermehrten und teilte die Pflanzen nach ihren Geschlechtsorganen ein. Also danach, ob sie Staub- (männliche Blütenteile) oder Fruchtblätter (weibliche Blütenteile) hatten und nach deren Zahl, Verteilung und Anordnung. Mit Hilfe der Staubgefäße bestimmte er die Klasse der Pflanzen. Mit Hilfe der Griffel, also der ebenfalls weiblichen Blütenteile, die Ordnung. Noch heute gilt dieses System als Grundlage für die systematische Betrachtung von Pflanzen. Außerdem führte er die biologischen Zeichen für weiblich und männlich ein.

carlvonlinne_symbole5.jpg
Linnésche Klassifikation: weiblich, männlich

Im Jahre 1766 reihte er erstmals auch den Menschen unter der Bezeichnung Homo sapiens zusammen mit Schimpansen und Orang-Utans in die Ordnung „Herrentiere“ ein und untergliederte die Hauptrassen des Menschen. Er machte das zu einer Zeit, in der man den Menschen noch als besondere Schöpfung und abgehoben von allen anderen Lebewesen sah.


Georges de Cuvier

 * 23. August 1769, † 13. Mai 1832

Georges de Cuvier

Georges de Cuvier wurde 1769 als Sohn eines Offiziers und einer Hausfrau in der ostfranzösischen Stadt Montbéliard geboren. Schon früh begann er sich für botanische- und zoologische Themen zu interessieren, studierte aber dennoch in Stuttgart mit juristischem und wirtschaftlichem Schwerpunkt. Während seiner langjährigen Zeit als Privatlehrer intensivierte er seine Arbeit mit biologischen Themen, insbesondere der vergleichenden Anatomie von marinen Lebewesen. Mit mehreren wissenschaftlichen Abhandlungen erarbeitete sich Cuvier auch ohne biologisches Studium ein hohes Ansehen in Frankreich. 1800 wurde er zum Professor der Zoologie ernannt. Durch seine akribische und genaue Forschung in Bezug auf die Ausgrabung fossiler Lebewesen und ihrer zeitlichen Einordnung (Stratigraphie) gilt Cuvier heute als Begründer der Paläontologie.

Cuvier prägte die sogenannte Katastrophentheorie. Bei seinen geologischen Ausgrabungen in Frankreich stieß er auf zahlreiche Fossilien. Je älter die Funde waren, desto mehr unterschieden sie sich von den rezenten, also noch lebenden, Arten. So nahm er an, der Artenwechsel sei auf einzelne Überschwemmungskatastrophen zurückzuführen. Jede dieser Katastrophen sorgte für das Aussterben vieler regionaler Arten. Mit der Zeit wanderten aus anderen Bereichen der Erde dann wieder neue Arten ein und veränderten somit das regionale Artenbild.
Zwischen den Schichten mit verschiedenen Arten fand er immer wieder marines Sedimentgestein mit fossilen Schneckenarten (Mollusken). Daraus schloss er fälschlicherweise, dass es durch Überflutungen zu einem abrupten Artensterben gekommen sein musste.

Eine weitere (irrtümliche) Annahme Cuviers ist die Artkonstanz, welche in ähnlicher Form auch vom schwedischen Naturforscher Carl von Linné vertreten wurde. Nach diesem Paradigma wird jegliche Form der Entwicklung abgelehnt, und von einer Unveränderlichkeit der Tier- und Pflanzenarten ausgegangen. Arten stammen demnach nicht voneinander ab, sondern sind ihrer Gestalt schon über die gesamte Erdzeitgeschichte existent gewesen.

Die Katastrophentheorie selbst ist zum Teil mit der Evolutionstheorie zu vereinbaren. Regionale, als auch globale Katastrophen verändern in der Tat das Artbild. So wäre die Entwicklung der Säugetiere nie in dem Maße verlaufen, wenn nicht ein Meteorit auf Yucatán eingeschlagen wäre und zum Aussterben der Dinosaurierer geführt hätte. Der zentrale Fehlschluss in Cuviers Theorie stellt aber die Annahme der Artkonstanz dar. Von einer Unveränderlichkeit der Arten auszugehen, widerspricht der Evolution im Kern. Cuvier hat die Ursache zur Veränderung des Artbildes in den Katastrophen selbst gesehen, und nicht in den von den Katastrophen verursachten neuen Umweltbedingungen. (Quelle: www.biologie-schule.de) 


Ernst Heinrich Philipp August Haeckel

* 16. Februar 1834 in Potsdam; † 9. August 1919
 
Ernst Haeckel
Ernst Haeckel war ein deutscher Zoologe, Philosoph und Freidenker, der die Ideen von Charles Darwin zu einer speziellen Abstammungslehre ausbaute. Er trug durch seine populären Schriften sehr zur Verbreitung des Darwinismus in Deutschland bei. Darüber hinaus erarbeitete er eine ausführliche embryologische Argumentation für die Evolutionstheorie und formulierte in diesem Zusammenhang das biogenetische Grundgesetz.

Ernst Haeckel war Arzt, später Professor für vergleichende Anatomie. Er prägte einige heute geläufige Begriffe der Biologie wie Stamm oder Ökologie. Auch bezeichnete er die Politik als angewandte Biologie.
Im Rahmen seiner Auseinandersetzungen mit der Übertragbarkeit rassischer Kategorien auf die gesellschaftliche Entwicklung des Menschen zählt Haeckel  zu den  entschiedenen Vertretern einer „eugenischen“ Sozialpolitik.  Er gilt als Wegbereiter der Eugenik und Rassenhygiene, weil er fortschrittsoptimistisch von der Evolution eine Höherentwicklung und keine „Degeneration“ erwartete. Nationalsozialistische Ideologen zogen Ausschnitte seiner Aussagen später als Begründung für ihren Rassismus und Sozialdarwinismus heran, erklärten gleichzeitig aber wesentliche Teile von Haeckels Weltbild als unvereinbar mit der völkisch-biologistischen Sichtweise des Nationalsozialismus. (Quelle: Wikipedia)

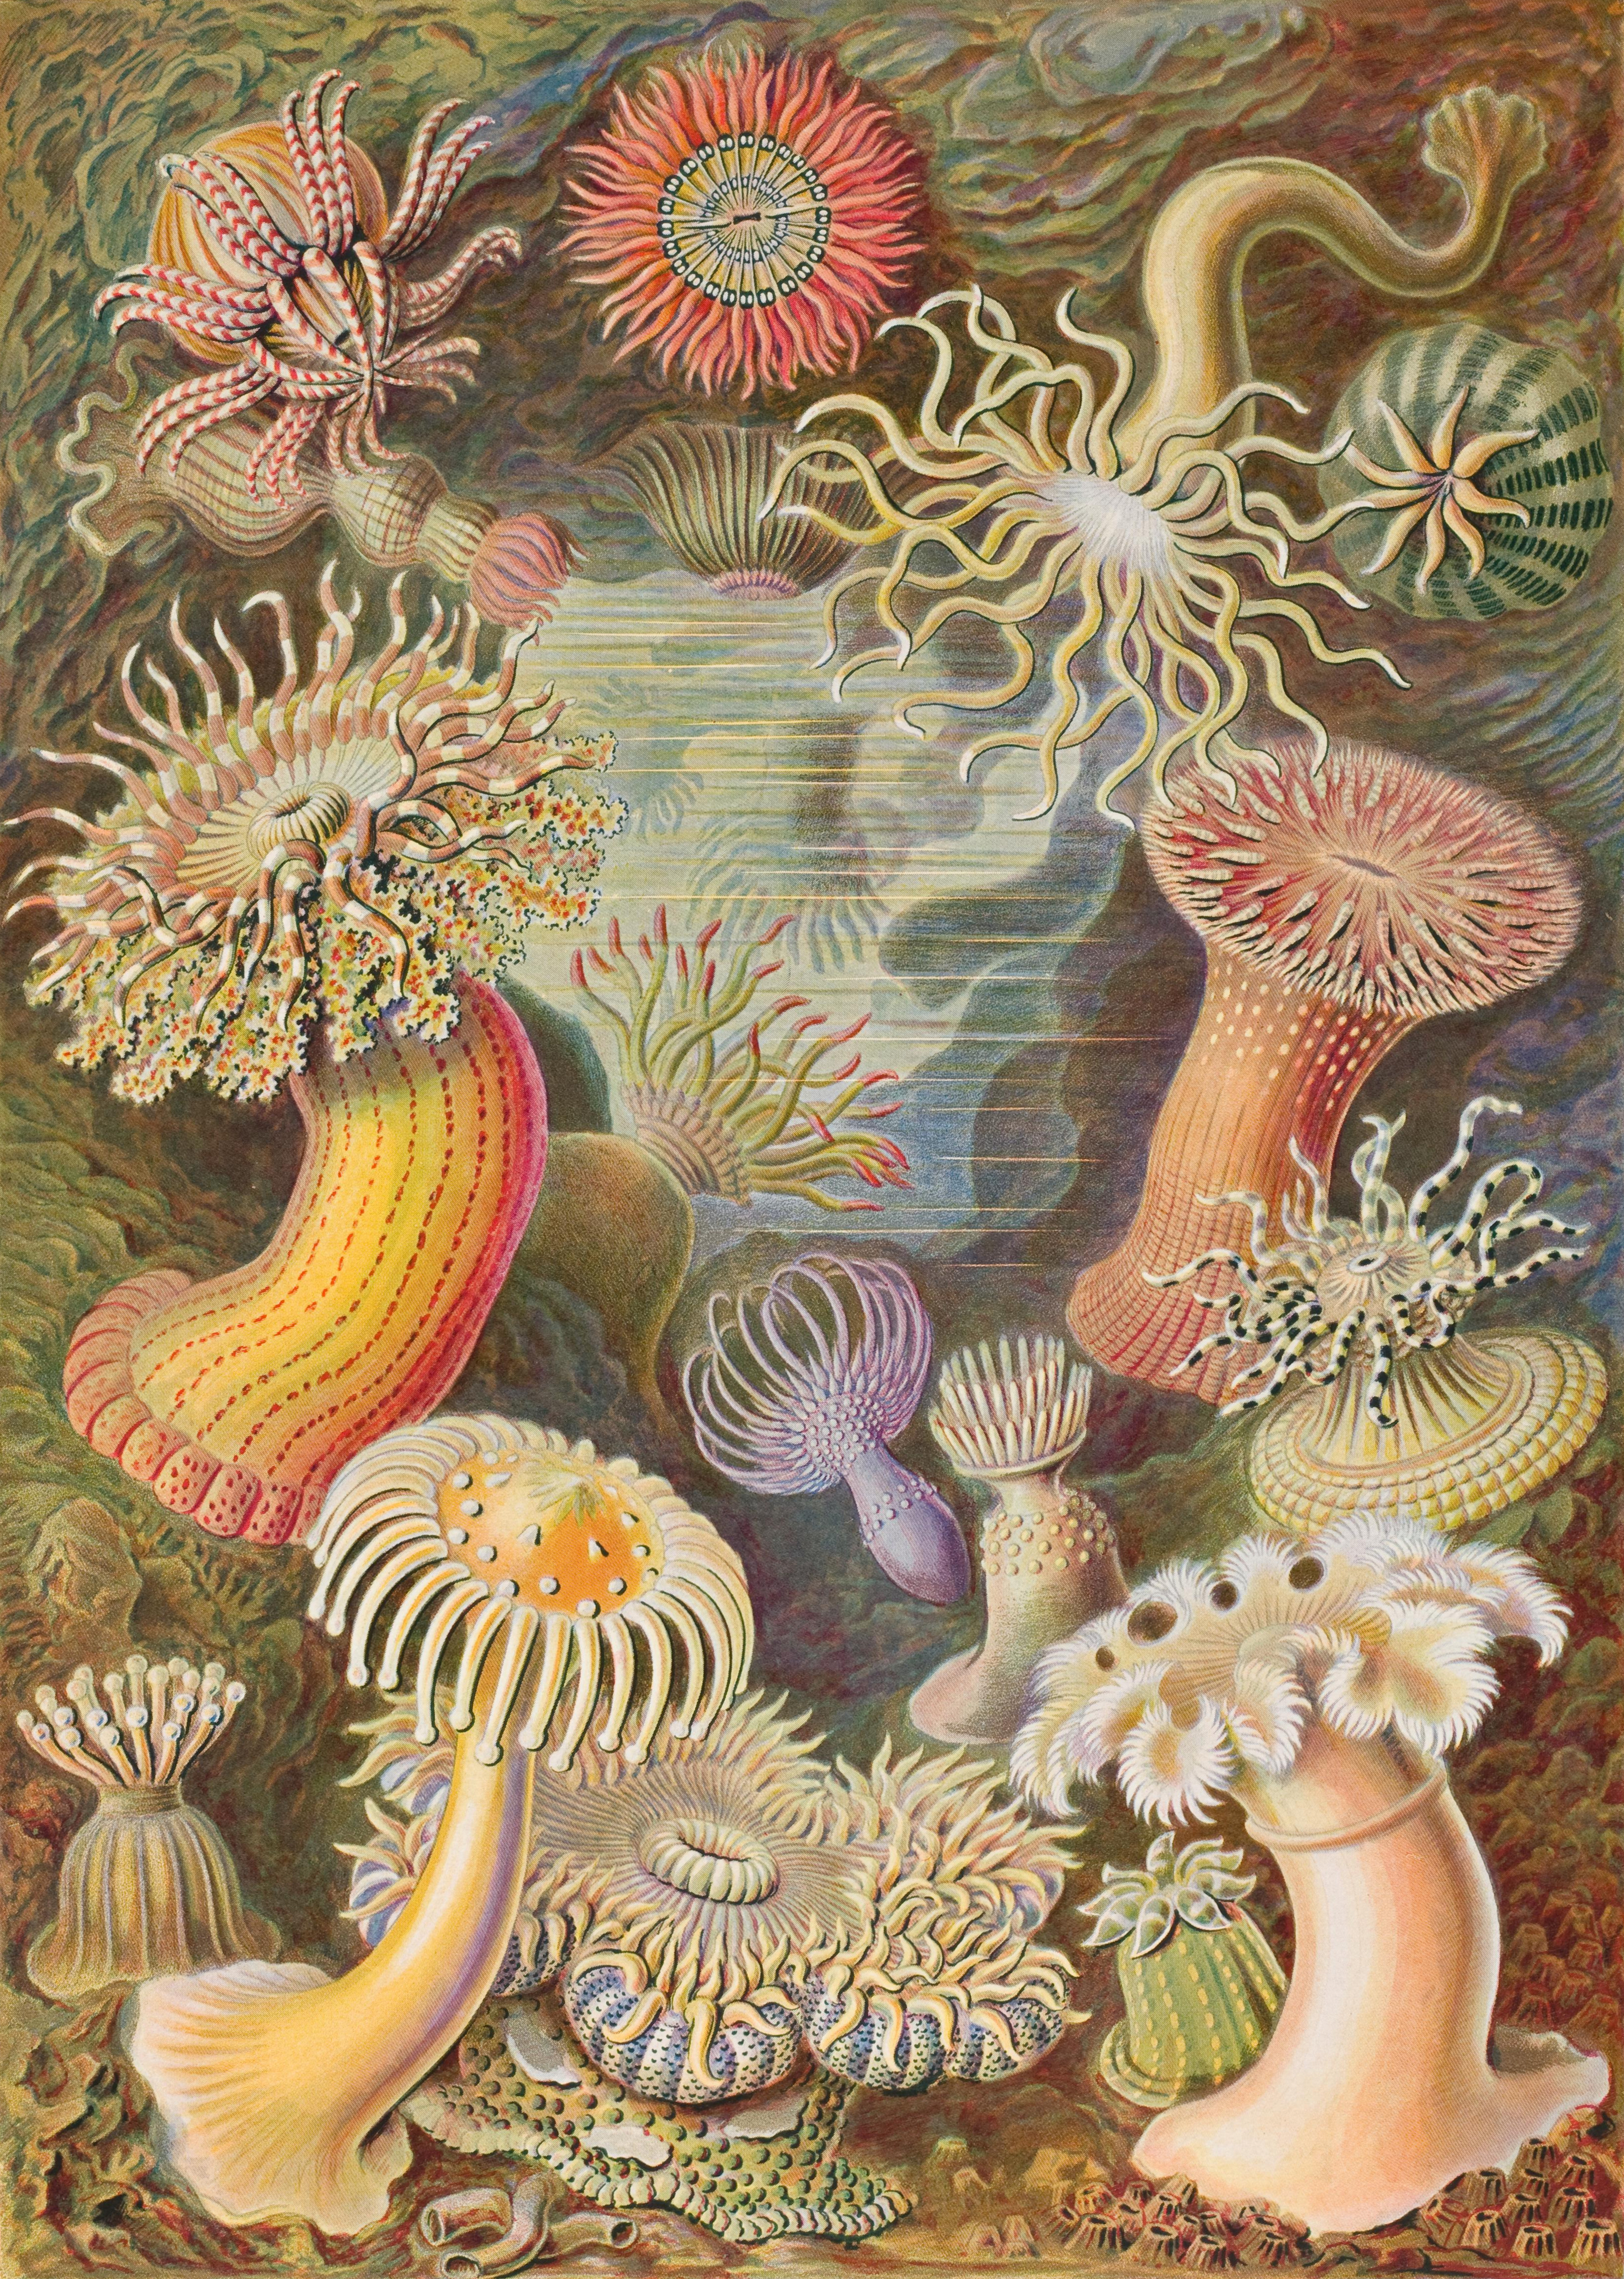
Besonders bekannt wurde Ernst Haeckel auch durch seine beeindruckenden künstlerischen Darstellungen natürlicher Lebensformen: